


蛋白互作是解析基因功能、阐明信号通路的核心切入点,经典核体系酵母双杂交虽使用广泛,却存在明显局限 —— 无法适配细胞膜、内质网、液泡、线粒体等各类全长跨膜蛋白,大量膜蛋白的互作机制难以用常规方法挖掘。针对这一痛点,基于分裂泛素机制的膜体系酵母双杂交应运而生,完美解决全长膜蛋白互作筛选难题。
不少老师初次接触该技术时,常会混淆泛素片段功能、载体选型逻辑,分不清核体系与膜体系的适用场景。今天我们就系统拆解膜体系酵母双杂交全套核心知识,从底层原理、常见误区、载体选择到真实文献案例逐一讲透。
一、原理背景
膜体系酵母双杂交是基于分裂泛素原理的一种实验技术,泛素——Ubiquitin, Ub,由 76 个氨基酸构成,人为把泛素在第 34/35 位氨基酸切开,形成 泛素N端片段——Nub(1–34 aa)、泛素C端片段——Cub(35–76 aa),这个切割位点不是随便选的,是为了实现单独两段不被蛋白酶识别,只有空间靠近时,才能重新折叠成完整泛素,触发切割信号,用作 “分子距离传感器”。
野生 Nub(NubI)的第 13 位为 Ile(异亮氨酸),可以自发和 Cub 组装成完整泛素,可用作阳性对照 ,而NubG是单点突变,13号位氨基酸发生突变,由异亮氨酸突变为甘氨酸,自发结合Cub能力几乎消失,只有依靠蛋白互作拉近才能组装。
将泛素拆分为 Cub 与 NubG 片段,分别融合诱饵膜蛋白与猎物蛋白。当诱饵与猎物蛋白发生相互作用时,促使 Cub 与 NubG 重新组装为完整泛素,被酵母内源泛素蛋白酶识别切割,释放相连的 LexA-VP16 转录因子,转录因子进入细胞核激活HIS3、ADE2、lacZ报告基因,使酵母在缺陷培养基上生长,以此判定蛋白之间存在相互作用。
具体来说,若两个蛋白存在相互作用,Bait 与 Prey 结合→空间拉近 Cub 和 NubG→重新组装形成完整泛素分子,酵母胞质内泛素特异性蛋白酶(UBPs)识别完整泛素,在 Cub 下游位点切割,释放游离的 LexA-VP16,LexA-VP16 进入细胞核,结合基因组上 LexA 响应元件,启动下游报告基因表达。若蛋白无相互作用,Cub 与 NubG 距离遥远,无法组装泛素;转录因子持续锚定在膜上,不能被切割释放,报告基因不激活。
NMY51为膜体系广泛应用的酵母菌株,酵母自带正常泛素基因(ub),用来维持细胞正常生命活动,而酵母本身并没有Nub、Cub,即分裂片段 NubG、Cub不存在于野生酵母,是构建在两个表达载体上的人工序列,转化酵母后才会在酵母内表达出来。载体表达:Bait-Cub 、Prey-NubG,蛋白互作→Cub 与 NubG 空间靠近,组装成类天然泛素构象,此时酵母自身产生的内源 UBP(泛素蛋白酶,酵母基因组编码)识别这个重构的泛素,执行切割。
二、常见原理问题解答
-
Nub 与 Cub 是否属于酵母内源蛋白?
不是。如果质粒不转化到酵母菌株内,则该空 NMY51菌株细胞内只有全长泛素蛋白, Nub、Cub片段蛋白无法表达。
-
内源泛素是否参与互作检测过程?
不参与。内源泛素行使酵母正常生理功能;分裂泛素系统通过外源表达的 Nub、Cub 片段产生检测信号,两套体系相互独立。
-
NubG与Nub有什么区别?
平时俗称的Nub是NubI,即野生型 N 端泛素片段,而NubG是人工突变版本,NubI(野生 Nub):第 13 位氨基酸=异亮氨酸 Ile(I),NubG:第 13 位 Ile → 甘氨酸 Gly(G)单点突变,NubI(野生 Nub)与 Cub高亲和力,不需要蛋白互作,二者在细胞内自发组装,只要同时表达 NubI + Cub,就重构完整泛素→UBP 切割转录因子,不依赖诱饵/猎物蛋白相互作用,NubG(突变体,筛库常规使用)与 Cub 亲和力极低,不会自发结合,只有诱饵蛋白和猎物蛋白发生相互作用,把 NubG、Cub 强行拉近,才能重新组装成完整泛素,信号完全依赖蛋白互作,可消除大量假阳性。
-
文库筛选为何不选用 NubI?
就算两个蛋白完全不结合,NubI 和 Cub凑到一起,酵母依然会长,分不清是蛋白互作还是片段自发结合,产生大量假阳性。
-
外源质粒的主要组成部分有哪些?
诱饵载体:Bait 蛋白 + Cub + LexA-VP16
猎物载体:Prey 蛋白 + NubG
酵母只提供LexA 的结合位点,不生产 LexA 蛋白,LexA 蛋白必须由诱饵质粒表达。
三、如何根据诱饵蛋白确定核/膜体系?
看我们的目标蛋白亚细胞定位,以及蛋白互作发生的场所,如果蛋白定位在细胞核、细胞质可溶性蛋白,选择核 Y2H(GAL4 体系,Y2HGold/AH109)。如果蛋白定位于细胞膜、内质网膜、液泡膜、叶绿体膜、线粒体膜等膜蛋白,我们就选择分裂泛素膜双杂(DUALmembrane,NMY51)。
表:核/膜体系主要区别
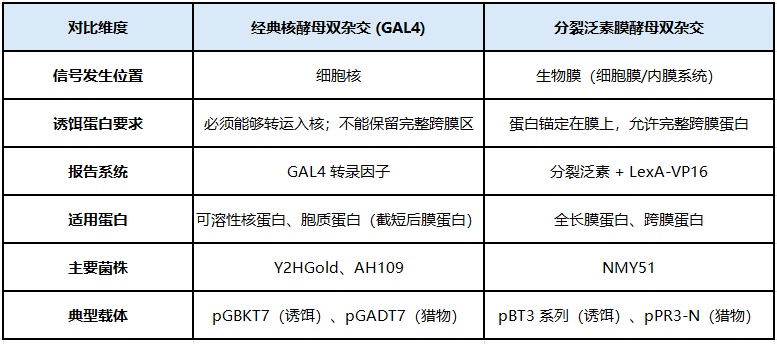
注:这里胞质蛋白(截短后膜蛋白)是指人为基因截短,删除跨膜区段(TM),只保留胞内/胞外可溶性结构域。
四、膜体系载体类型众多,该如何确定?
当我们确定选用膜体系做酵母双杂交实验后,我们需要根据诱饵蛋白的C端、N端在细胞中的位置、信号肽有无以及跨膜结构域的数量进行具体的载体选择。
若Bait蛋白N端位于细胞质,Bait蛋白C端位于细胞外或细胞器腔,则Bait载体选择pBT3-N;若Bait蛋白N端位于细胞质,Bait蛋白C端也位于细胞质,则Bait载体选择pBT3-N/ pBT3-STE;若Bait蛋白N端位于细胞外/细胞器腔,且N端有信号肽,Bait蛋白C端位于细胞质,则Bait载体选择pBT3-SUC;若Bait蛋白N端位于细胞外/细胞器腔,Bait蛋白C端位于细胞质,且N端无信号肽,则Bait载体选择pBT3-STE(如下表);而prey载体则一般选择ppR3-N载体。
我们可以通过具体的湿实验去验证上述Bait载体选择是否正确,用同一诱饵蛋白 A 构建三种不同融合方式的诱饵质粒,即pBT3-N-A、pBT3-STE-A、pBT3-SUC-A,再与阳性对照质粒 pOst1-NubI(NubI不依赖猎物蛋白能单独与Cub结合,从而激活报告基因,证明诱饵蛋白适用于膜体系实验)共转,通过观察哪一组能激活报告基因,进而确定膜蛋白的载体类型。
表:Bait 载体选择依据
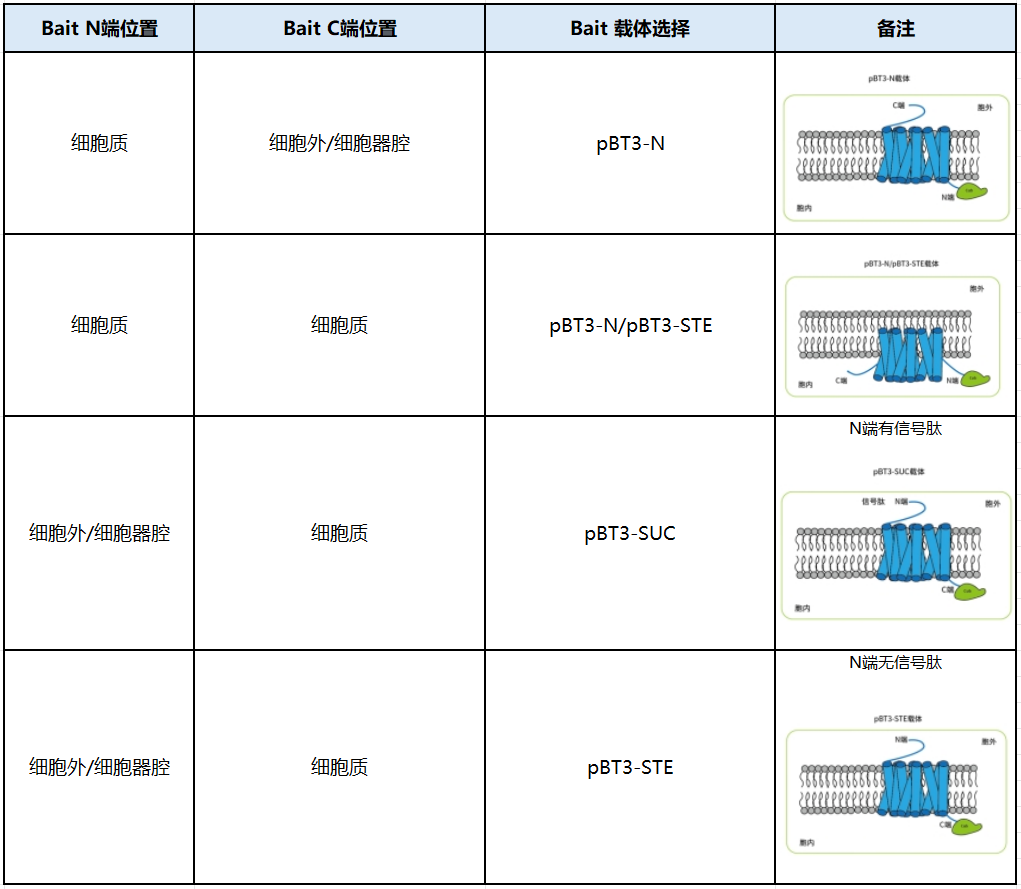
注:若N端和C端都位于胞外,可截短使得C端出现位于胞内段,再选择相应载体
五、文献应用
以2025年1月,奥地利格拉茨大学、中国科学院青岛生物能源与过程研究所等研究团队在期刊Plant Physiology上在线发表的“UBIQUITIN-CONJUGATING ENZYME34 mediates pyrophosphatase AVP1 turnover and regulates abiotic stress responses in Arabidopsis”一文为例(IF=8.2)。
植物对非生物胁迫反应的分子机制对于开发气候适应型作物至关重要。其中的关键因素,例如质子泵焦磷酸酶(AVP1),已经被发现,但它们的功能和调控机制仍不清楚。在这项研究中,作者探讨了泛素连接酶UBC34对AVP1的翻译后调控及其在拟南芥盐胁迫和磷饥饿反应中的相关性。通过体外和体内实验,确认UBC34与AVP1相互作用并对其进行泛素化。下调UBC34的突变株对盐和无机磷(Pi)低胁迫表现出更高耐受性,而UBC34过表达的植物则相反。结果显示,UBC34与AVP1共定位,并且在ubc34突变体的质膜分馏中,AVP1的活性增强,表明UBC34介导质膜局部AVP1的周转。还观察到UBC34影响根细胞的细胞壁外pH,而不影响液泡pH。基于这些结果,作者提出了一个机制模型:UBC34介导根表皮细胞质膜上AVP1的周转。在盐和磷饥饿条件下下调UBC34可以增强AVP1活性,从而形成更高的质子梯度,有利于钠的隔离和磷的吸收。
通过膜酵母双杂交(图A)、LCI、FRET、Co-IP、体外 Pull-down五层独立互作实验,从酵母膜原位、植物活体、体外纯蛋白三个维度共同证实:E2 泛素结合酶 UBC34 与跨膜质子焦磷酸酶 AVP1 存在直接的物理相互作用,为后续 UBC34 介导 AVP1 泛素降解的分子机制奠定直接互作证据基础。
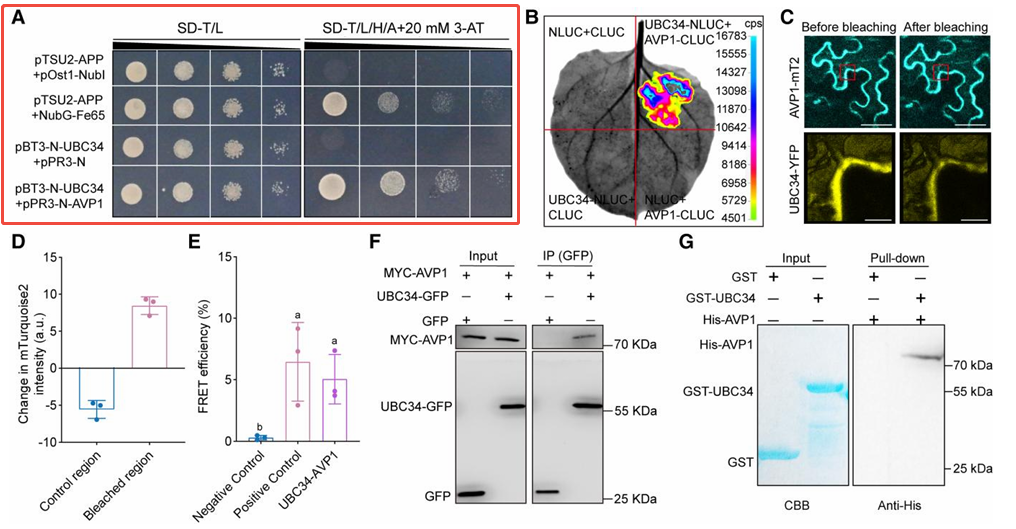
图. AVP1和UBC34的蛋白质–蛋白质相互作用潜力。A) 通过分裂泛素酵母双杂交法证明UBC34与AVP1的相互作用。B) 通过在瞬时转化烟草(Nicotiana benthamiana)叶片中的荧光素酶互补检测UBC34和AVP1的相互作用。相互作用产生的发光强度以伪彩色显示。C) 代表性FRET图像显示在瞬时转化的N. benthamiana叶片中,供体AVP1-mT2在受体UBC34-YFP漂白前后的荧光情况。图中标出的矩形区域表示漂白区域。D) AVP1-mT2在C中未漂白和漂白区域的荧光变化。E) AVP1-mT2和UBC34-YFP及对照的Förster共振能量转移(FRET)效率。SUC2-mT2和UBC34-YFP组合作为阳性对照,SUC2-mT2和STP1-YFP作为阴性对照。F) MYC-AVP1和UBC34-GFP的共免疫沉淀实验。G) GST-UBC34与His-AVP1在拉下实验中的相互作用测试。分子量以千道尔顿(kDa)表示。差异显著性通过双向ANOVA分析,不同字母表示在P<0.05下显著差异。CBB, 考马斯亮蓝。


 扫一扫


 471

 被折叠的 条评论
为什么被折叠?
 到【灌水乐园】发言


