


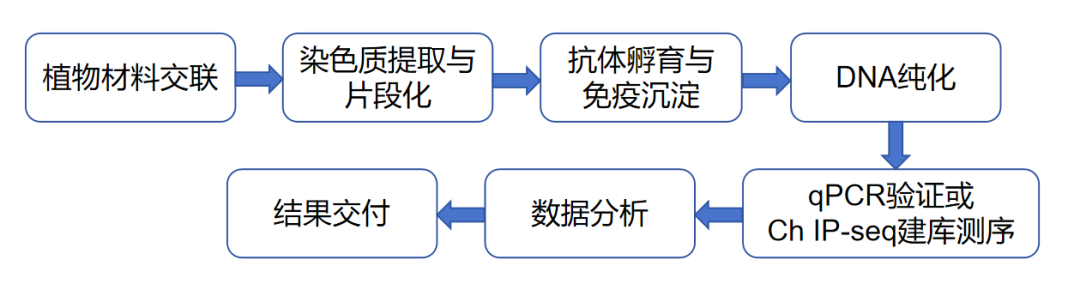
ChIP-qPCR(染色质免疫共沉淀结合实时定量PCR)是一种用于验证蛋白质与特定DNA序列相互作用的实验技术,是研究蛋白质-DNA靶向互作的黄金标准技术,尤其适用于转录因子结合验证、表观遗传修饰定量及疾病机制研究,其核心价值在于高特异性定量能力。包括4个部分:
(1)甲醛交联(固定植物组织中蛋白与DNA的相互作用)
(2)染色质片段化(超声或酶切将染色质打断至200-500bp)
(3)免疫沉淀(使用特异性抗体富集目标蛋白结合的DNA片段)
(4)DNA纯化与测序(解交联后纯化DNA,通过qPCR分析靶序列)
那它和CHIP-seq技术有什么区别呢?
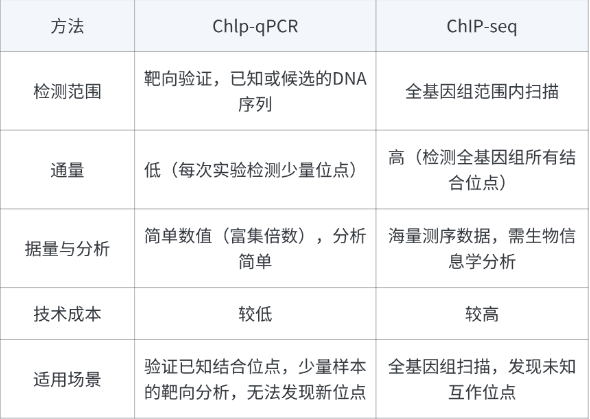
总之,ChIP-qPCR 和 ChIP-seq 是 ChIP 技术的 “姐妹篇”。
前者是靶向验证的 “显微镜”,适合对已知位点进行精准定量;
后者是全域探索的 “望远镜”,适合发现新的蛋白质 - DNA 结合规律。
实际研究中,常先用 ChIP-seq 筛选候选位点,再用 ChIP-qPCR 验证,两者结合可高效推动基因调控和表观遗传研究。
技术路线
实验中常见问题
Q1怎样选择高特异性的的CHIP级别抗体?
可以通过抗体查询网站CiteAb 查询(http://www.citeab.com/)。
Q2ChIP实验中DNA的检测在什么情况下用PCR反应? 什么情况下用测序?
若蛋白结合的DNA序列已知,则可使用PCR反应进行检测。
一般来说,PCR反应时扩增片段长度200-400bp最佳,如果模板DNA片段过长,结合位点的邻近DNA会出现一定程度的信号富集;
若蛋白结合的DNA序列是未知的,则可使用ChIP-Seq检测。
Q3染色质片段化不合格,片段长度异常,琼脂糖凝胶电泳显示片段集中在 > 500bp 或 < 50bp,qPCR 扩增效率低是什么原因,该怎么解决?
原因:
(1)片段过长:超声功率不足、 时间不够;
(2)片段过短:过度超声等,丢失靶标区域。
解决方法:
超声条件优化:
针对不同样本(如贴壁细胞、组织块)
(1)预实验测试功率(20-30%);
(2)时间(每次 10-30 秒,间隔 30 秒冷却);
目标片段控制在 100-300bp。
Q4实验中染色质为什么要片段化?
(1)让目标抗原 “暴露 。
(2)确保 qPCR 检测的特异性:CHIP-qPCR 最终目的是通过 qPCR 定量富集DNA 片段,验证目标蛋白与特定 DNA 序列的结合。
(3)提高免疫沉淀效率:
过大的染色质片段难以被抗体-磁珠复合物有效捕获,且在洗涤过程中容易残留非特异性结合的杂质,导致背景信号升高。
Q洗液中的NaCl浓度过高,导致特异性抗体结合被清除,该如何处理洗液中的NaCl浓度不能高于500 mM。
Q6阴性对照(IgG IP)样品的背景过高?原因:
非特异性 DNA 或蛋白质被 IgG-磁珠复合物错误沉淀,导致 qPCR 检测到的信号偏高,掩盖了特异性富集(IP 组与 IgG 组的差异被缩小);
解决办法:
(1)优化抗体选择与用量:
a. 选用 ChIP 级对照 IgG:优先 选择经验证无 DNA 非特异性结 合的 IgG,避免使用普通 WB 级 IgG。
b. 验证 IgG 纯度:通过 SDS-PAGE 检测 IgG 纯度,确保没有杂蛋白条带;必要时可预孵育。
(2) 改善染色质质量:
a. 严格控制片段化大小:通过预实验优化超声或酶解条件,确保染色质片段集中在 100-300bp,减少非特异性结合的表面积。
b. 优化交联条件:缩短甲醛交联时间(动物细胞 10-15 分钟,植物细胞 15-20 分钟),用甘氨酸充分终止,避免过度交联形成聚集体。
应用领域
转录因子与DNA互作研究
2024年12月31日,西南大学阮华/黄红辉团队联合重庆大学邱菊辉/王贵学团队以An animal model recapitulates human hepatic diseases associated with GATA6 mutations为题发表于PNAS期刊。
研究人员构建了 gata6 敲除斑马鱼模型,利用 ChIP-qPCR(图G)实验发现 Gata6 显著富集于含有推测结合位点的斑马鱼 lrh-1 启动子区域,揭示了 Gata6 与 Hhex 相互作用,共同促进 lrh-1 的转录。
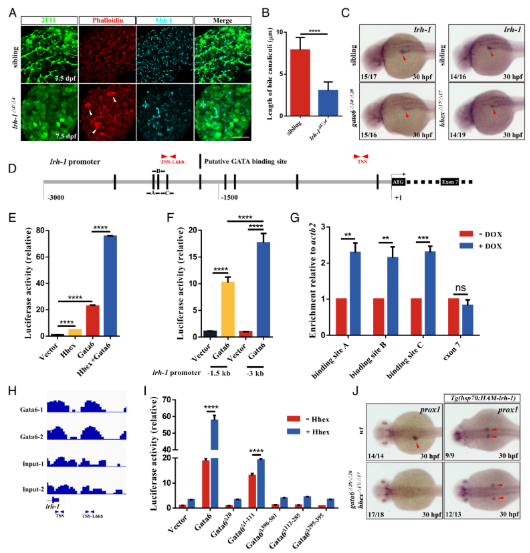
图:Gata6 和 Hhex 协同激活 lrh-1 基因表达
(Shi et al., 2025)
组蛋白修饰与基因表达关系研究
2025年2月15日,四川大学华西医院卢强教授团队以《Histone lactylation drives liver cancer metastasis by facilitating NSF1-mediated ferroptosis resistance after microwave ablation》为题发表于《Redox Biology》期刊。
该研究探讨了组蛋白乳酸化在肝癌微波消融术后转移中的作用机制,通过 ChIP-qPCR (图k)分析组蛋白修饰与染色质区域的结合情况,揭示了组蛋白乳酸化通过调控 NFS1 介导的铁死亡抵抗促进肿瘤进展的分子通路。
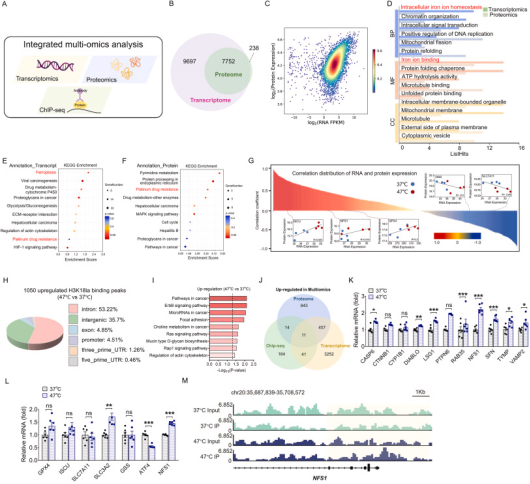
图:H3K18a驱动NFS1表达上调,抑制热处理HCC的铁死亡
(Huang et al., 2025)
比较不同样本中特定基因组区域的富集差异
2025年7月7日,西北农林科技大学园艺学院徐记迪副教授、管清美教授和塔里木大学王江波副教授团队合作,以An integrative multi-omics analysis of histone modifications and DNA methylation reveals the epigenomic landscape in apple under drought stress为题发表于Plant Biotechnology Journal (PBJ)期刊。
研究运用 ChIP-seq 技术分析了六种组蛋白修饰在干旱处理下的变化,并通过 ChIP-qPCR 验证了 OCP3 上游组蛋白修饰的变化(图c),比较了苹果在干旱处理不同时间点的特定基因组区域的组蛋白修饰富集差异。
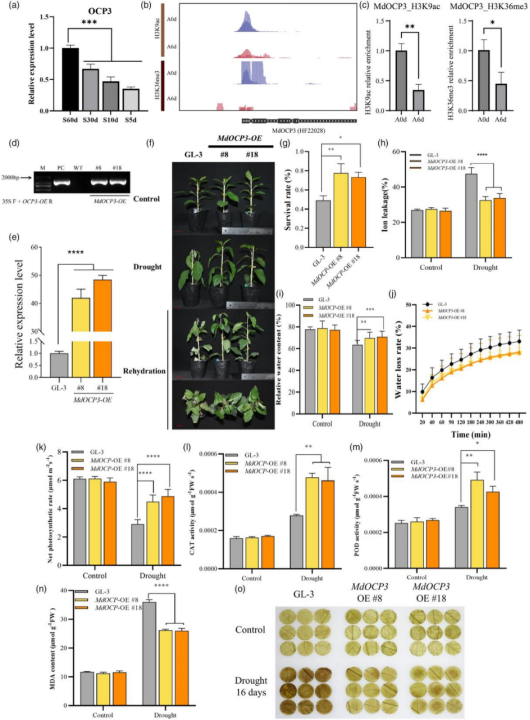
图:组蛋白修饰调控的MdOCP3正向调控苹果耐旱性
(Wang et al., 2025)
局限性
a.依赖特异性抗体,质量影响结果的可靠性
抗体特异性差或亲和力不足,会导致假阳性或信号微弱,影响后续 qPCR 定量的准确性。
b. 只能验证已知的 DNA 结合位点
ChIP-qPCR 需先预设目标 DNA 区域(如基因启动子、增强子区域),通过 qPCR 检测该区域在沉淀产物中的富集程度,无法发现新的结合位点。
c. 受限于样本类型和处理方式
部分样本(如植物细胞、坚硬组织)染色质提取难度大,可能因细胞裂解不充分或杂质残留影响实验。
甲醛交联可能导致蛋白质构象改变,或使某些弱相互作用被 “固定”,干扰真实结合状态的检测。
项目署名文
发表单位:中国水稻研究所
发表期刊:Journal of Advanced Research
影响因子:12.822
发表时间:2022年8月1日
文章名称:The clock component OsLUX regulates rice heading through recruiting OsELF3-1 and OsELF4s to repress Hd1 and Ghd7
研究背景:
昼夜节律协调内部生理和外部环境因素影响谷物开花,这对于生殖生长和最佳产量至关重要。
研究旨在确认OsLUX在水稻中如何调节开花时间。
进一步研究表明,OsELF4s-OsELF3-1-OsLUX复合物直接调控开花基因以介导水稻抽穗。
Hd1 和 Ghd7 是水稻光周期开花的重要调节因子。
在elh1突变体中,Hd1和Ghd7的表达水平上调,LDs和SDs下调的表达模式相似。
在拟南芥中,LUX与输出基因启动子中的LBS基序结合,我们通过使用在线工具PlantCARE在Hd1和Ghd7的启动子中发现了假定的LBS基序,意味着Hd1和Ghd7可能是OsLUX的直接靶基因。
为了验证这一假设,在NLDs下使用表达抗FLAG抗体的幼苗p35S::FLAG:OsLUX进行了ChIp-qPCR分析。在体内S4区域发现OsLUX显著富集,而不是S1、S2和S3区域。通过电泳迁移率实验(EMSA)表明 OsLUX 与 S4 位点结合。
此外,作者还进一步进行了转录活性测定,以证实OsLUX对Hd1的抑制作用。将p35S::OsLUX表达载体与pHd1::LUC共转化到本氏烟草中,结果显示,p35S::OsLUX中的LUC活性显著低于阴性对照。
同样,OsLUX也直接与Ghd7启动子中的LBS结合以抑制其表达。遗传学研究证实了 OsLUX 在 Hd1 和 Ghd7 调节中的生物学功能。通过CRISPR/Cas9技术获得oslux-3 hd1双突变体,并通过筛选F1(elh1 × ghd7,)的F2植物获得了oslux-1 ghd7双突变体。
遗传资料表明,Hd1和Ghd7在OsLUX下游调控水稻开花。通过LUC 瞬时转录活性测定表明OsLUX作为转录抑制因子结合抑制Hd1活性。进一步检测荧光素酶发光强度发现进OsEC复合物对Ghd7具有类似的抑制作用。
综上所述,这些结果表明 OsEC 复合物直接与 Hd1 和 Ghd7 启动子结合并抑制其表达。
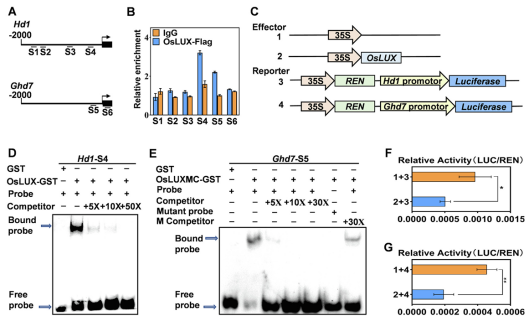
图:OsEC复合物与Hd1和Ghd7的启动子结合并抑制其表达
(Xu et al., 2022)


 扫一扫


 被折叠的 条评论
为什么被折叠?
 到【灌水乐园】发言


