


植物生长在自然环境中难免受到病原微生物的侵染,植物本身固着生长无法通过移动自身来规避病原微生物从而避免侵害,为了应对病原微生物的感染植物进化出了两层免疫系统:模式触发免疫(PTI)和效应触发免疫(ETI)。PTI是植物对病原微生物感染早期的反应模式,为模式分子触发的植物基础免疫,依靠质膜上的模式识别受体(PRRs)识别保守的病原体相关分子模式(PAMPs),从而引发活性氧迸发、胼胝质沉积等基础防御应答;
另一种免疫模式为ETI 即效应子触发型免疫,是植物的第二层免疫防御机制;病原菌分泌毒性效应蛋白压制PTI基础免疫,而后胞内的NLR(核苷酸‑亮氨酸富集重复受体)能够直接识别效应蛋白,随即启动强度更高的免疫反应,同时ETI还能增强PTI免疫应答,共同强化植株抗病能力。
病原菌可分泌效应蛋白抑制 PTI,此时胞内抗病 R蛋白识别病菌效应因子,激活强度更高、常伴随超敏细胞死亡的 ETI 效应子触发免疫,两层免疫通路相互协同,构成植物抵御病菌侵染的整套先天防御系统。早期研究普遍认为PTI与ETI是两条相互独立的信号通路。但近年来顶刊研究证实,两条通路存在复杂的信号串扰、双向协同、层级赋能关系,共同决定植物的抗病强度与免疫稳态,也是当前植物病害分子机制、抗病育种、表观调控领域的核心研究热点。
PTI(模式触发免疫)与ETI(效应子触发免疫)是植物抗病的两大核心通路,构成了“基础防御+精准反击”的双层免疫防线。
植物双层免疫通路(PTI+ETI)
完整机制
1. PTI:植物第一道广谱基础免疫防线
PTI(Pattern-Triggered Immunity,模式触发免疫)是植物细胞膜层面的基础防御系统,是植物抵御病原入侵的第一道屏障,具备广谱性、基础性、低能耗的特点。
核心作用机制:植物细胞膜上分布大量PRR模式识别受体(FLS2、EFR、CERK1等),可特异性识别病原菌保守的PAMP分子,包括细菌鞭毛蛋白、真菌几丁质、病原菌脂多糖等通用病原特征分子。
下游核心免疫反应:识别后快速激活Ca2+内流、MAPK级联反应、BIK1激酶磷酸化、轻度ROS活性氧爆发、胼胝质沉积增厚细胞壁,同时诱导PR抗病基因表达,快速抑制大部分非特异性病原的初步侵染。
为成功侵染寄主,病原菌会向植物细胞内分泌大量效应子(Effector),靶向抑制PTI核心蛋白活性、阻断免疫信号传导,压制植物基础防御,形成ETS(效应子触发易感性),实现成功定植与增殖。
2. ETI:植物第二道特异性强效免疫防线
ETI(Effector-Triggered Immunity,效应子触发免疫)是植物胞内的高阶特异性防御体系,是病原菌突破PTI后启动的终极反击机制,具备特异性强、免疫强度高、抑菌效果显著的特点。
核心作用机制:植物胞内大量表达NLR抗性蛋白,可精准识别病原菌入侵后分泌的特异性效应子,直接感知病原的侵染逃逸行为。
下游核心免疫反应:触发高强度、持续性ROS爆发、剧烈Ca2+信号波动、SA/JA激素通路激活,诱导HR过敏性细胞坏死,通过侵染位点局部细胞程序性死亡,彻底困住病原菌扩散,阻断病害蔓延。
3. 经典植物免疫攻防循环模型
PTI基础防御激活 → 病原菌分泌效应子压制PTI形成ETS易感状态 → 植物NLR识别效应子启动ETI强效免疫 → 病原菌变异效应子逃逸识别 → 植物进化新型NLR受体,形成持续的“病原-寄主”军备竞赛。
文献案例
文献案例一
以2026发表在PNAS上的“A fungal effector inhibits plant MAPK signaling by acting as a decoy substrate of MKK5.”为例。
为确定VdHCE 1是否能够损害宿主的抗性,作者通过过表达VdHCE 1发现,VdHCE 1能够有效抑制几丁质诱导的MAPK活化、ROS迸发和PTI标记基因WRKY22/29的表达,表明VdHCE 1能够抑制植物中的PTI反应。由于MAPK通路在PTI和ETI中均起着中心信号枢纽作用,作者还发现VdHCE 1能够在ETI激活的植株中有效抑制ETI免疫反应。之后作者通过检测VdHCE 1突变体感染植株中的MPK3/6磷酸化的水平发现,突变体感染植株MPK3/6的磷酸化水平明显高于野生型,说明VdHCE 1早期感染就会影响MAPK信号传导。总的来说,VdHCE1 在病菌感染初期抑制植物免疫反应的过程中起着关键作用。
作者通过IP-MS筛选,Y2H、Co-IP、Pull down验证了VdHCE 1与MKK5互作,且MKK5能够磷酸化VdHCE 1。已知MKK5能够磷酸化MRK3/6,为验证VdHCE 1 是否会与MPK3/6竞争结合MKK5,作者发现随着VdHCE1 浓度的增加,磷酸化后的 MPK3 /6 比例显著降低;但VdHCE 1T166A则无影响。这些结果表明 VdHCE1 与 MPK3/K6 竞争成为 MKK5 的底物,从而抑制了由 MAPK 介导的免疫信号传导。 总之,这些发现表明病原体相关分子模式(PAMPs)以及来自大丽轮枝菌(V. dahliae)的细胞内效应物分别被植物的 PRR 受体和 NLR 受体识别,从而激活了 PTI和 ETI反应,以及下游的 MAPK 信号级联反应。这种“底物竞争”机制解释了在大丽轮枝菌感染期间观察到的免疫抑制,并为理解植物对大丽轮枝菌病原体抗性提供了分子框架(图1,2)。
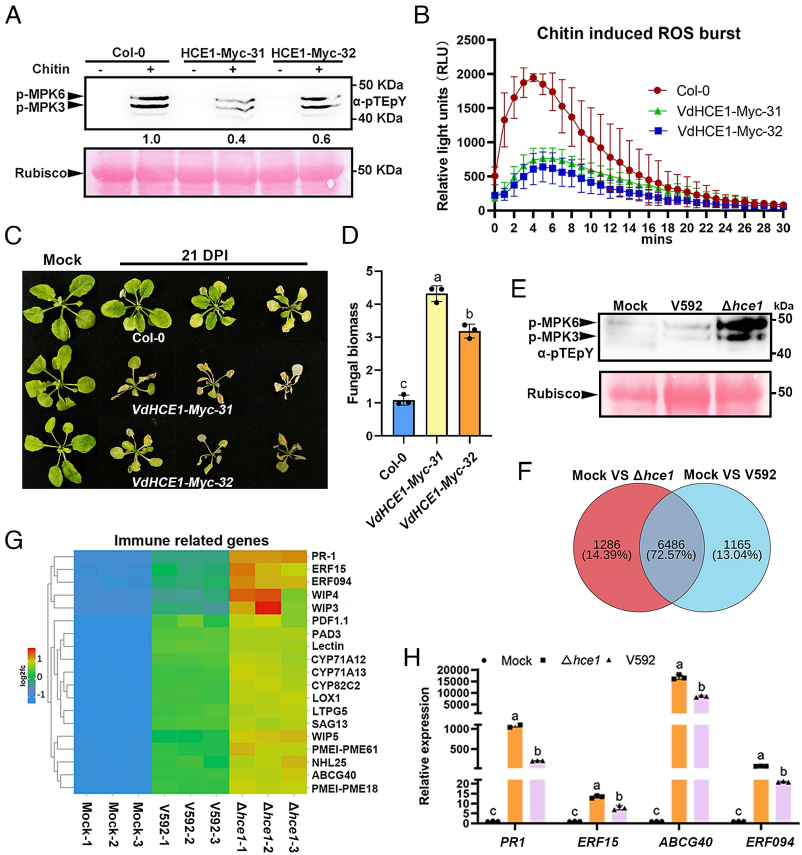
图1 VdHCE1抑制植物免疫应答
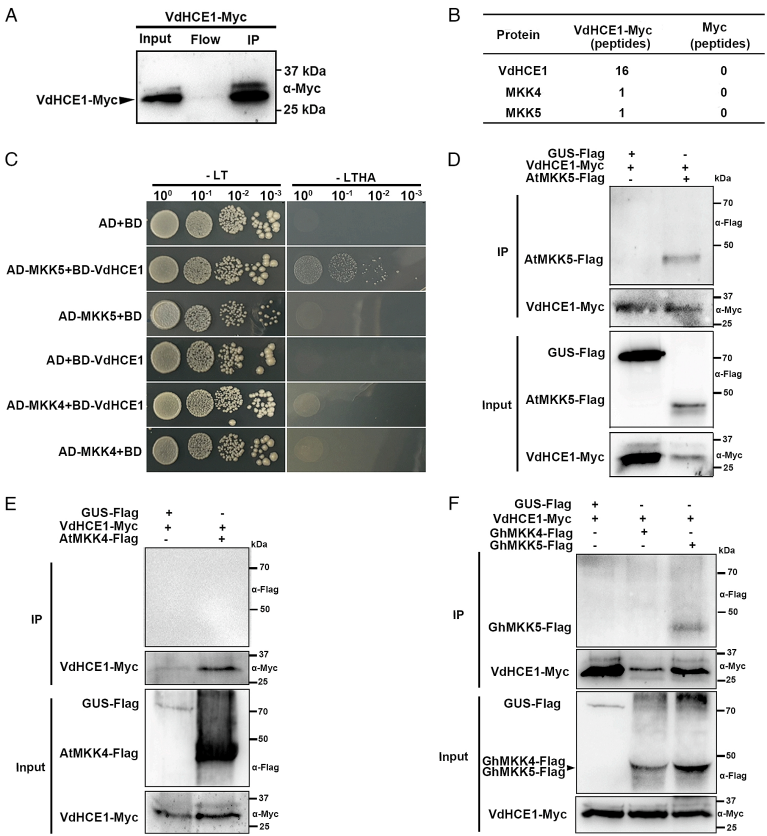
图2 VdHCE1与植物MKK5相互作用
文献案例二
以2026发表在Science上的“Surface immune signaling unlocks NLR activation through mRNA alternative splicing.”为例。
作者首先通过细胞膜免疫信号分子INF1和flg22处理烟草、马铃薯后发现,马铃薯晚疫病抗性蛋白(Rpi-vnt 1.1)的5' 端mRNA可变剪切显著增强,免疫反应明显增强。若缺失PTI关键共受体BAK1或在植物中沉默,剪切水平显著降低,Rpi-vnt1.1介导的抗病反应也明显减弱。说明Rpi-vnt 1.1介导的免疫完全激活需要PRR信号传导,也就是说PTI是Rpi-vnt 1.1介导的免疫的完全激活所必需的。
而后作者还发现,Rpi-vnt 1.1的内含子剪接对于其完全激活以触发免疫应答是必需的,其N-末端延伸具有自身抑制作用,即Rpi-vnt 1.1中的末端前结构域会抑制抗性体形成。当感知到病原体时,PTI信号传导诱导Rpi-vnt 1.1 mRNA发生选择性剪接,从而引发Rpi-vnt 1.1被致病疫霉效应子AVRvnt 1激活(图3,4)。该研究发现了一种此前未被认识的机制:PTI通过促进农艺上重要的抗晚疫病NLR基因Rpi-vnt1.1的可变剪接,从而增强ETI。阐明了细胞如何将细胞表面的危险信号转化为激活胞内防御系统的方式,同时避免在无病原威胁时发生潜在的免疫自激活。
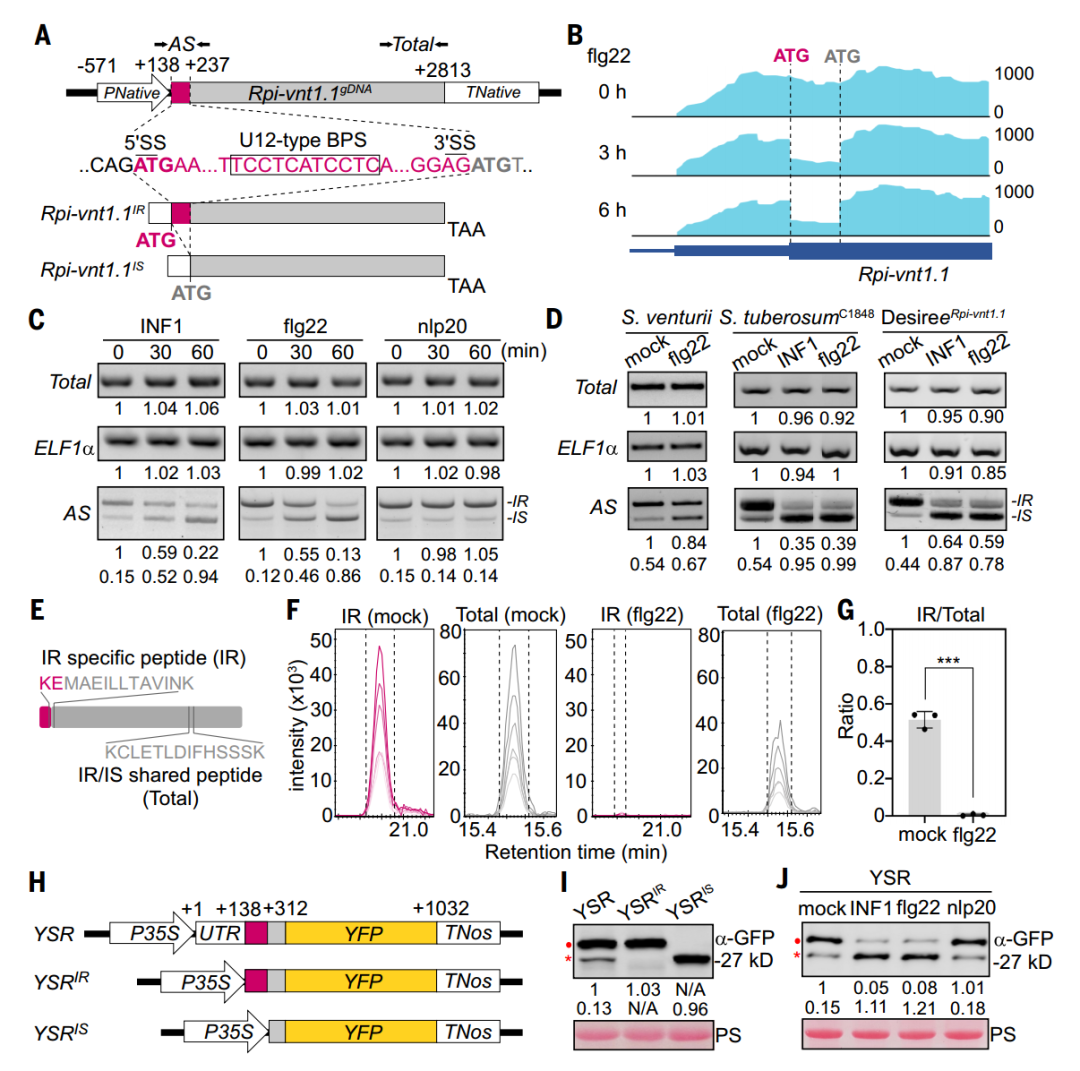
图3 PTI促进Rpi-vnt 1.1 mRNA剪接
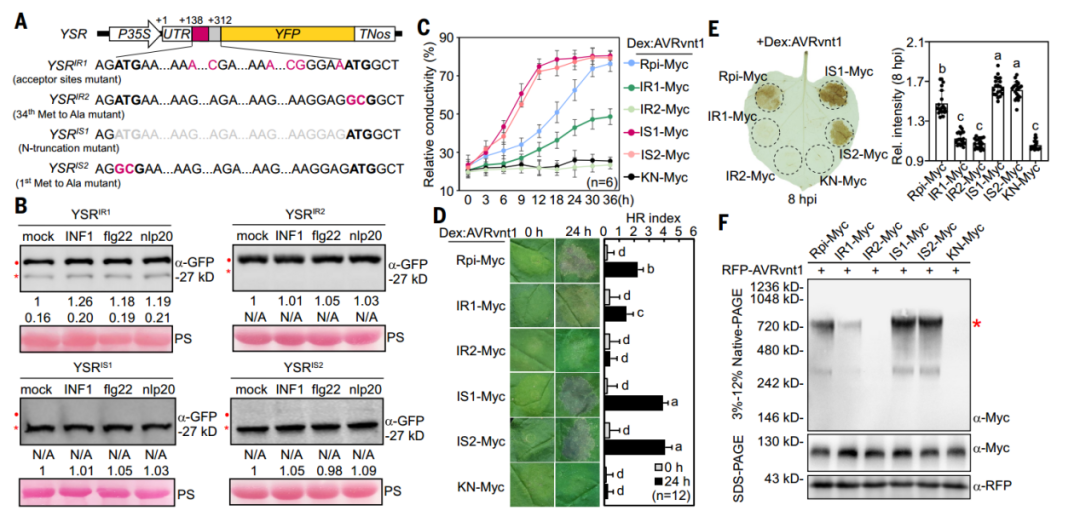
图4 Rpi-vnt 1.1的mRNA剪接是其免疫激活所必需的
文献案例三
以2021发表在Nature上的“NLRs guard metabolism to coordinate pattern- and effector-triggered immunity. ”为例。
水稻PigmR(NLR)对作者所有已测真菌都具有一定抗性,暗示它在结合PTI和ETI方面的潜在抗病功能。作者发现若敲除PICI1会使Pigm介导的稻瘟抗性降低,且PICI1还与Pi9和Pizt23的螺旋结构域互作从而赋予植株类似PigmR21的抗病能力,但不与Pish相互作用,说明PICI1诱导ETI的前提是和特定的NLR互作。
作者还研究了PICI1在植物PTI中的潜在作用。结果发现,在PICI1-KO植株中,几丁质诱导的ROS以及病原相关基因的表达受到抑制,而在PICI1-OE植株中被增强;此外PICI1也由flag22和Xanthomonas oryzae pv. oryzae(Xoo)诱导,PICI-KO增强易感性,PICI-OE增强抗性,表明PICI1在水稻PTI中发挥着关键作用。值得注意的是,PICI1-KO会损害PTI,但不影响由Pish介导的ETI,这表明PICI1介导的PTI可能与ETI分离。
最终作者确定了水稻(Oryza sativa)中的去泛素酶 PICI1为 PTI 和 ETI 的免疫枢纽。PICI1 通过去泛素化和稳定甲硫氨酸合成酶来激活甲硫氨酸介导的免疫反应,主要通过植物激素乙烯的生物合成来实现。PICI1 会被病原菌效应物(包括 AvrPi9)降解,从而抑制 PTI。 植物的NLR,如 PigmR,能够保护 PICI1 避免被效应物降解,从而重启甲硫氨酸-乙烯级联反应。
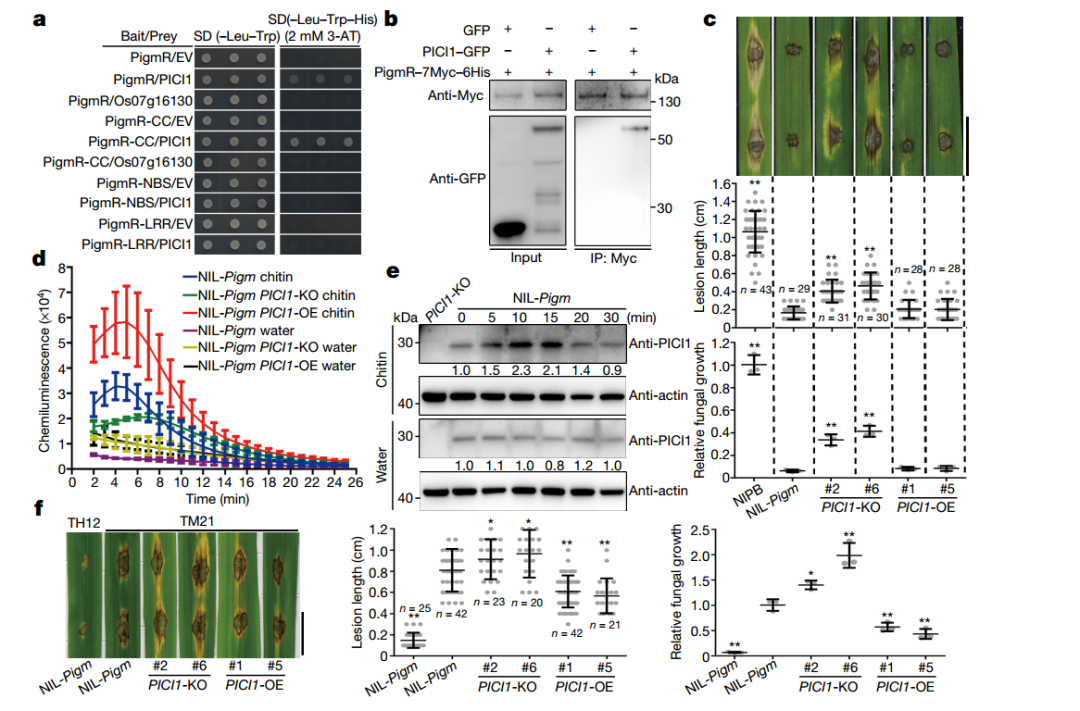
图5 PICI 1与PigmR相互作用并调节PigmR介导的
稻瘟病抗性和PTI反应
PTI-ETI核心串扰调控靶点
(当下研究热点)
结合近年研究进展,目前已明确的双层免疫互通核心靶点,是病害分子机制课题的核心研究方向:
01 ROS合成核心模块(RBOHD)
ETI调控蛋白丰度,PTI调控蛋白活性,是双层免疫协同的核心功能蛋白;
02 钙信号-CPK激酶通路
承接PTI早期微弱信号、放大ETI晚期强效信号,串联全程免疫反应;
03 MAPK级联激酶、BIK1/BAK1
受体激酶
PTI核心组件,同时受ETI转录调控,是免疫信号放大的关键;
04 植物激素通路(SA/JA/ET)
承接PTI、ETI下游信号,分别调控活体/死体病原菌防御,形成免疫调控网络;
05 表观遗传修饰
组蛋白乙酰化/甲基化、转录因子结合,直接调控PTI/ETI核心基因的转录激活与沉默。
表观遗传视角:PTI/ETI通路的
高阶调控机制(高分文章突破口)
随着基础通路机制逐渐清晰,表观遗传调控已成为PTI/ETI研究的新风口,不改变基因序列,通过染色质修饰、转录因子结合动态调控免疫基因表达,是国自然、一区期刊的核心创新点。
1、激活型组蛋白修饰(H3K4me3、H3K27ac)
富集于PRR受体、BIK1、NLR抗病基因的TSS转录起始位点,促进PTI/ETI通路基因转录激活,增强植株抗病性;
2. 抑制型组蛋白修饰(H3K27me3)
常态下沉默过量表达的NLR基因,避免植株自发免疫损伤;病原菌可通过调控该修饰逃逸ETI识别;
3. 免疫转录因子调控
WRKY、bZIP、MYB等转录因子特异性结合PTI/ETI核心基因启动子,调控通路激活强度,是机制验证的核心靶点。
核心实验支撑:ChIP-seq(全基因组筛选免疫相关修饰位点/转录因子靶基因)+ ChIP-qPCR(靶向验证关键基因富集水平),是解析植物免疫表观调控机制的金标准实验体系。
落地科研思路:植物PTI/ETI
病害机制课题设计方案
01样本筛选与转录组测序
设置病原菌侵染不同时间梯度、对照/处理组,筛选PTI / ETI通路差异表达基因,锁定核心调控靶点;
02基因功能验证
构建基因过表达、沉默、敲除株系,通过病菌接种、ROS检测、胼胝质染色、HR坏死观察,验证基因对PTI基础抗性、ETI特异性免疫的调控功能
03信号通路解析
检测MAPK、钙信号、激素通路指标,明确基因调控双层免疫的下游信号路径
04分子互作验证
酵母双杂交、Co-IP验证蛋白互作,双荧光素酶验证启动子激活关系
05表观机制深挖
通过ChIP-seq筛选全基因组修饰位点,ChIP-qPCR定量验证核心免疫基因的组蛋白修饰、转录因子结合水平,提升深度与创新性
总结
植物的PTI与ETI并非独立的两条免疫通路,而是一套分层启动、双向赋能、精准调控的完整抗病系统:PTI是全天候基础边防,抵御广谱病原入侵;ETI是精准化终极反击,消灭突破防线的特异性病原菌。二者通过ROS、钙信号、激酶通路、表观修饰实现深度串扰,共同维持植物免疫稳态。
当下植物病害分子机制研究,已从“单一通路解析”转向通路协同调控、表观精准调控、细胞特异性调控的高阶方向,尤其是表观遗传与PTI/ETI的结合研究。
若您正在开展植物抗病机制、转录因子调控、蛋白修饰相关课题,需要实验技术支撑,可随时咨询,一站式助力课题结题与成果产出。


 扫一扫


 1205

 被折叠的 条评论
为什么被折叠?
 到【灌水乐园】发言


