
ヒトの攻撃性は進化の過程で低下したのか、増大したのか

本稿では、ホモ・サピエンスが示す攻撃性がどのように進化してきたのかを解説します。攻撃性には、「反応的攻撃性」と「能動的攻撃性」という2つの側面があると言われています。ヒトは、脅威やストレスに反応する攻撃性(反応的攻撃性)については低下する方向に進化してきたと考えられています。一方で、集団間の紛争や暴力などを引き起こす計画的な攻撃性(能動的攻撃性)は、高く維持された、あるいは高まったと推測されます。
本記事は、以下の著書の第6章「なぜヒトは助け、そして攻撃するのか」の一部をもとにしています。
暴力による死亡は減少しているのか
ヒトは他者に協力的に振る舞い、利他的行動をとる傾向を進化させてきた(「ヒトの向社会的行動の進化:なぜ人は利他的に振る舞うのか」参照)。しかし一方で、集団外のメンバーに対して敵意を示したり、攻撃的になったりする傾向も進化させている。それでは、ヒトはチンパンジーと約600万年前に分岐して以降、攻撃性を低下させる方向に進化してきたのか、それとも増大させる方向に進化してきたのだろうか。
心理学者のピンカーは、人類の歴史の中で暴力は減少してきており、現代社会は「これまでで最も平和な時代」であると述べている(1)。とはいえ、近年のウクライナ戦争やイスラエルとハマスの衝突などを見れば、本当にそうなのか疑問に感じる人も多いであろう。
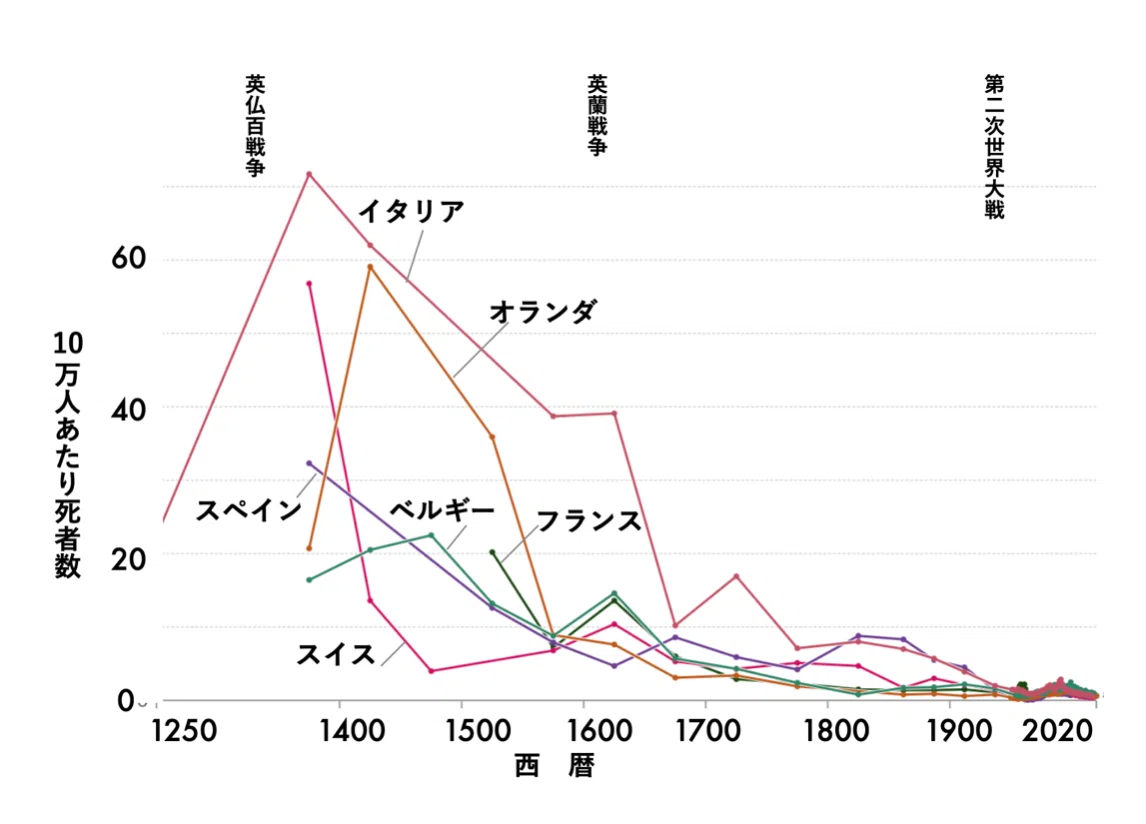
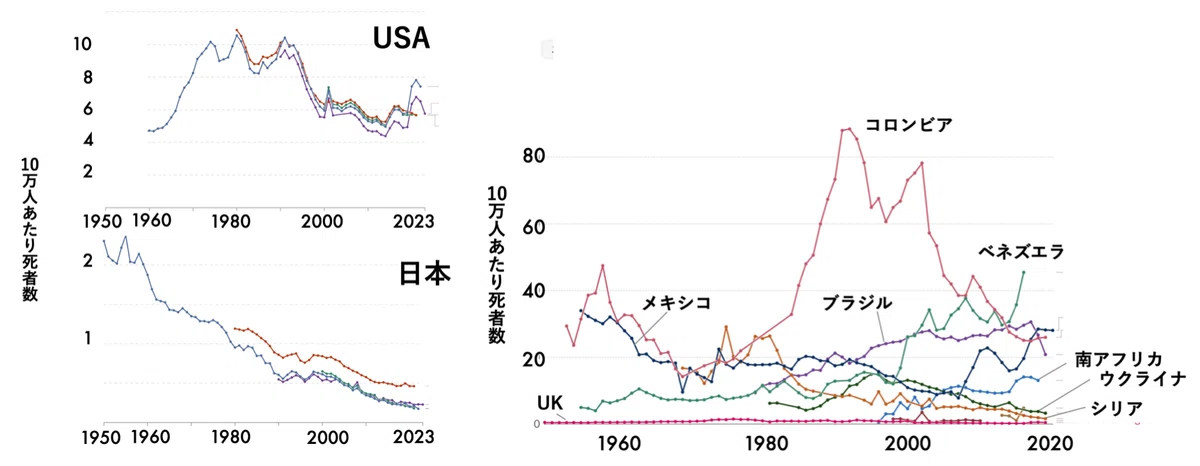
約600万年前からの人類の進化を検討する前に、まずは近年の状況を概観してみよう。具体的には、殺人や戦争といった「暴力」による死亡が、現代においてどの程度の規模であるかを確認していく。ヨーロッパの歴史を辿ると、1200年頃から現代にかけて、暴力による死者数は漸減していることがわかる(図1)。日本においても、1950年以降は殺人そのものが比較的少なく、暴力による死者数は減少傾向にある(図1)。本データには示されていないが、1200年以降の鎌倉時代から戦国時代にかけては、殺人による死亡は相当数にのぼり、その後、時代が下るにつれて減少していったと推察される。一方で、アメリカ合衆国では明確な減少傾向が見られるとは言い難い。また、アフリカや南米の一部の国々においても、この100年間で暴力による死亡が減少しているとは断定できないのが現状である(図2)。
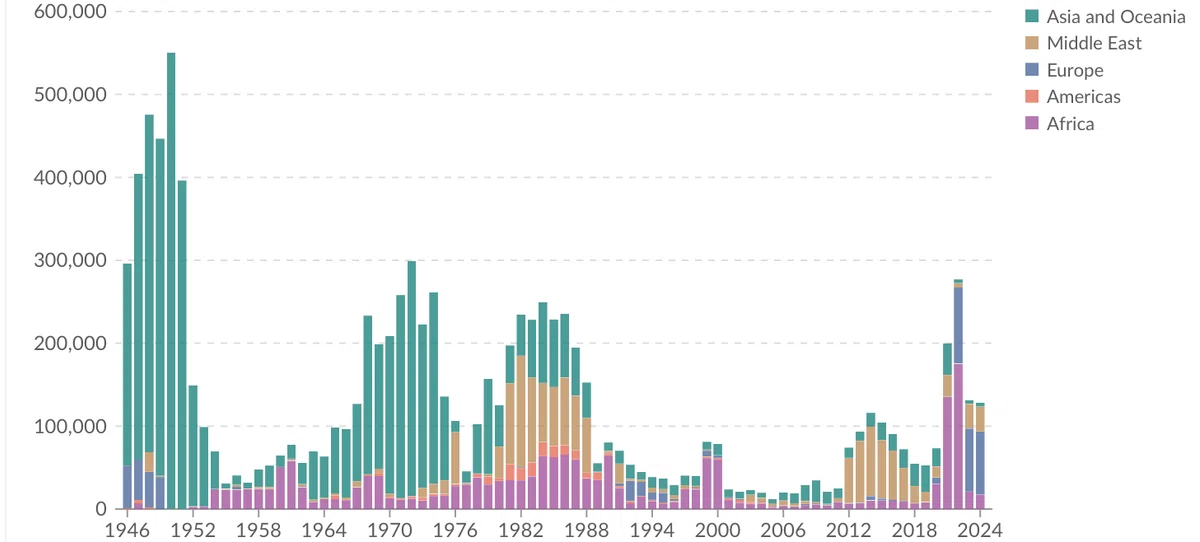
また、国家間紛争などによる死亡数についても、第二次世界大戦期には極めて多かった。しかし、その後、一貫して減少しているとは必ずしもいえない(図3)。現在においても、世界各地で国家間や集団間の闘争が続いており、多くの人々が命を落としている状況にある。
近年の殺人や戦争による死亡者数の推移は、ヒトが遺伝的な影響を受けている攻撃性の進化を反映したものではなく、社会制度や社会的・文化的状況の変化を反映したものだと考えることができる。しかし、いかなる社会であっても殺人をゼロにすることはできず、世界中の多くの人々が「世界平和」や「戦争反対」を唱えても、国家・民族・宗教・思想集団間の闘争や任意の集団間の敵対は止まない。これは、ヒトが本来備えている攻撃性に起因するものであろう。
約600万年にわたる攻撃性の変化
ヒトがチンパンジーとの共通祖先から分岐して以降、約600万年の過程で攻撃性はどのように変化してきたのであろうか。ヒトと他の哺乳類、特にチンパンジーなどの類人猿とを比較し、その攻撃性を検討してみよう。攻撃性を調べるために、約1000種の哺乳類を対象として、同種個体間でどの程度「攻撃による死亡(致死的暴力)」が生じているのかを分析した研究がある(2)。その結果、およそ40%の哺乳類の種において、同種間の暴力による死亡が確認された。この研究によれば、単独で生活する動物よりも、群れを形成するなど社会的に生活する動物のほうが、仲間同士の暴力が多い傾向にあるとされる。

特に霊長類では、仲間同士の暴力による死亡がみられる傾向が強いことが知られている。人類の祖先の系統(チンパンジーとの共通祖先から分岐し、ホモ・サピエンスに至るまでの系統)における平均的な致死的暴力(攻撃による死亡の割合)は、全死因のうち約2%と推定されている(2)。この値はボノボ(0.68%)よりは高いが、チンパンジー(4.49%)よりは低い値である。ボノボにおける攻撃性の低下は、チンパンジーとの分岐後に生じたと考えられている。そのため、人類の系統は、共通祖先から分岐して以降の約600万年間に、攻撃性を相対的に弱めてきた可能性があるといる。
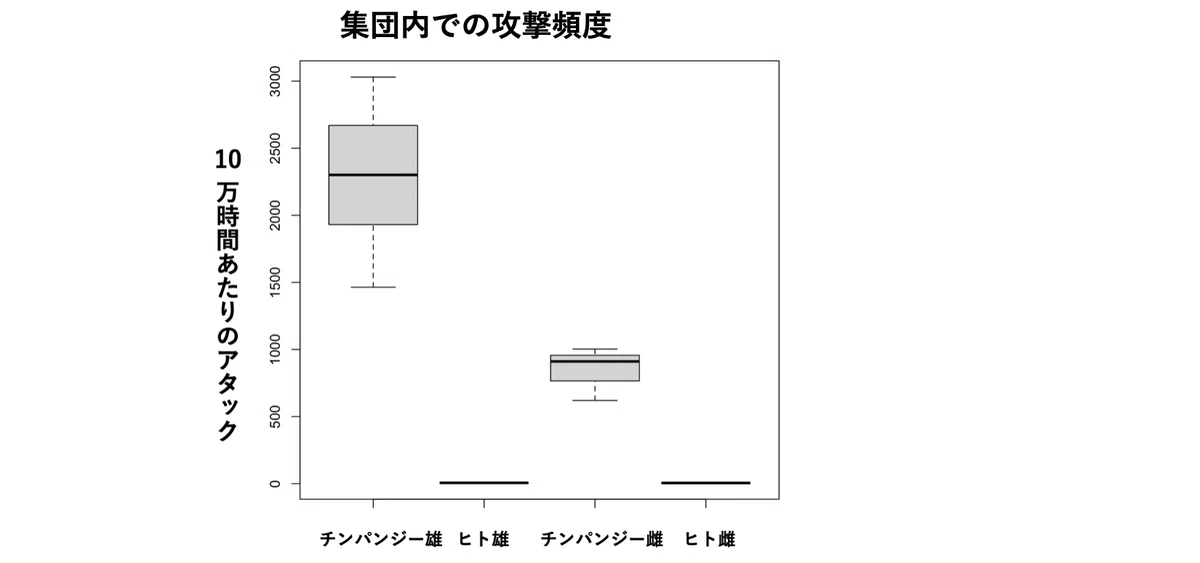
自然状態において集団内でどの程度攻撃が生じるのかについて、チンパンジーの群れとオーストラリアのアボリジニーの集団を比較した研究がある。その結果、チンパンジーでは10万時間あたり2000回を超える攻撃行動が観察されたのに対し、人間ではほとんど観察されなかったと報告されている(3)。このことから、人間はチンパンジーに比べて攻撃性がかなり低いと考えられる(図5)。
人類において、およそ5万年前以降にどの程度の致死的暴力が存在していたのかを検討すると(図6)(2)、いずれの時代においても、ヒトの攻撃性の平均的推定値である2.0%と大きく乖離する傾向はみられない。しかし、約3000年前の鉄器時代や中世(およそ1300年前から500年前頃)には、致死的暴力の割合が一時的に高まっていたことが示されている。これに対して、近代以降(およそ500年前から現在にかけて)では、致死的暴力の割合は低下傾向にある。

先に述べたように、近現代のヨーロッパでは、10万人あたりの殺人による死亡数は減少傾向にある。日本では1200年頃からの統計は存在しないが、1950年以降の統計を見ると、10万人あたりの殺人による死亡率は大きく低下している。これらの事実から、ヒトの致死的暴力による死亡はチンパンジーと比べて全体的に低く、鉄器時代から中世にかけて一時的に高まったものの、その後は減少してきたと考えられる。
また、この研究によれば、致死的暴力が増加した時期は、大規模で組織的な集団間戦争が頻発した時期とは必ずしも一致していないこと、さらに人口規模が大きい地域ほど暴力が増えるという単純な関係もみられなかったことが示されている(2)。
人間社会の構造や制度は、暴力の発生様式と深く関係している可能性がある。そこで、現代の人間社会を四つのタイプに分類し、致死的暴力の割合を比較した(図7)(2)。図5-3を見ると、狩猟採集民のバンドや部族、首長制社会においては、致死的暴力の割合が高いことが示されている。狩猟採集民の間で暴力が増加した背景には、集団が密集して生活するようになり、他集団との競合が生じやすくなったことが関係していると考えられている(2)。また、首長制社会において暴力が多かった理由としては、土地の争奪、人口や資源の不足、地位や権力をめぐる競争などが関係していたとされる(4)。一方で、国家という形態の社会になると、暴力の行使権限が国家に集中し、個人間の致死的暴力は相対的に減少したと考えられている(4)。
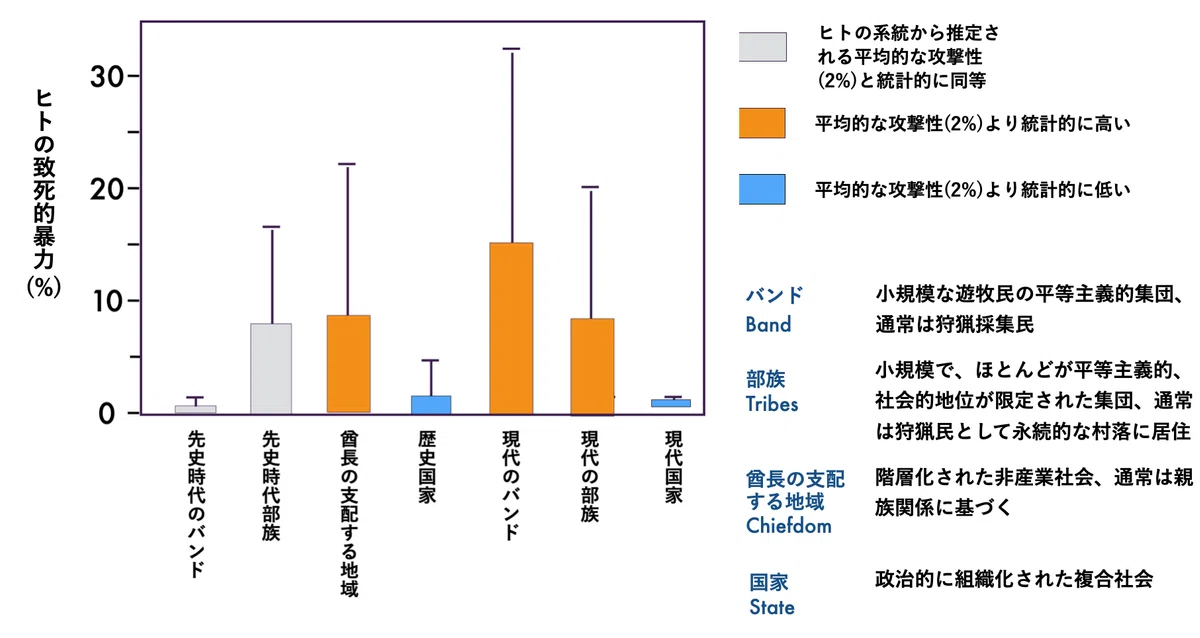
現代の国家社会では、歴史的にみると致死的暴力は減少してきているが、戦争やテロといった大規模な暴力が消滅したわけではない。たとえば、テロによる死亡者数は1980年以降増加傾向にあり、2010年以降はさらに増加しているとされる(5)。戦争による犠牲者も、図3で示したように、近年ではウクライナやパレスチナ・イスラエルにおいて再び増加しているのが現状である(図3)。
これらの事実から考えられるのは、ヒトでは仲間同士の間での攻撃性が、チンパンジーと比べて弱まる方向に進化してきた可能性である。すなわち、ヒトは集団内においてより協力的に行動するようになったと考えられる。しかし、その一方で、集団間あるいは集団外の人との争いにおいては致命的な暴力が減少したとは必ずしもいえず、むしろ激化する局面もみられる。実際に、チンパンジーとヒトの狩猟採集民を比較すると、集団間闘争による死亡率は、ヒトがチンパンジーと同程度、あるいはそれ以上であると報告されている(図8)(3)。このように、ヒトの攻撃性の進化には、集団内部で低下した側面と、集団間においては低下していないという、二つの側面が存在するようである。

反応的攻撃性と能動的攻撃性
リチャード・ランガムは、攻撃性を「反応的攻撃性 (reactive aggression)」と「能動的攻撃性(proactive aggression)」の二つに区別している(6)。反応的攻撃性とは、脅威やストレスを感じたときに、それを排除しようとする反応として生じる攻撃である。たとえば、何かを奪われそうになったり、攻撃を受けそうになったときに、とっさに反撃して争いになる場合がある。また、侮辱されたり、近年ではSNSで批判されたりした際に、即座に怒りの反応を示して攻撃的になることも、反応的攻撃性の一例である。このような行動は、脅威や不快感を軽減するための反応といえる。
一方、能動的攻撃性とは、何らかの報酬や目的を達成するために、あらかじめ計画して行われる攻撃である。ここでいう報酬には、金銭や物品といった物理的利益だけでなく、「満足感」や「自尊心の回復」といった心理的報酬も含まれる。たとえば、計画的な殺人、他集団への襲撃、戦争、いじめなどがその例である。こうした攻撃は、強い怒りや興奮を伴わず、比較的冷静に遂行されることが多いという特徴をもつ。
ランガムは、チンパンジーと比較して、ヒトでは反応的攻撃性が低下する方向に進化した一方で、能動的攻撃性は必ずしも低下していないと述べている(6)。また、ボノボは、おそらく100万〜200万年前以降に、反応的攻撃性と能動的攻撃性の双方が低下したと考えられている。いずれにしても、チンパンジーやボノボと比較すると、ヒトは能動的攻撃性が「高い」カテゴリーに属し、反応的攻撃性の頻度は「低い」カテゴリーに属するとされている(7)。
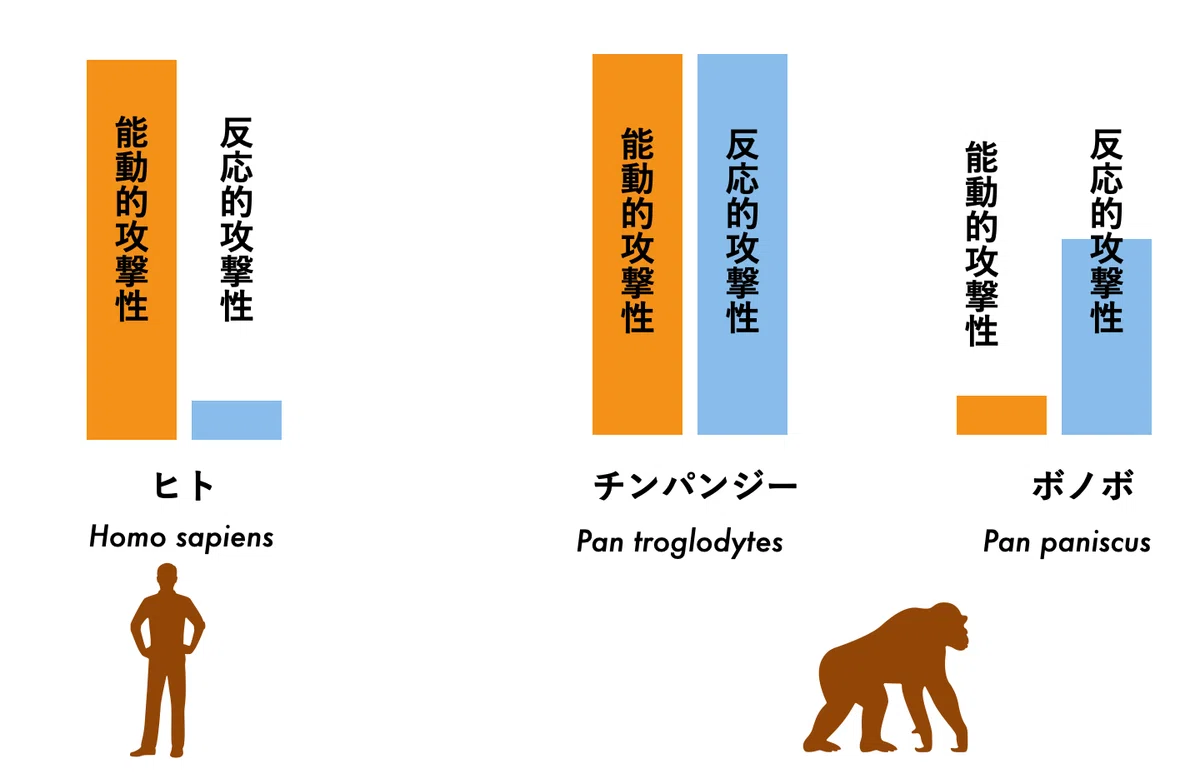
反応的攻撃性は、ほとんどすべての生物にみられる一般的な行動である。多くの場合、脅威やストレスを感じたときに、自らを守るための防衛反応として生じる。たとえば、突然攻撃されそうになった際に反射的に反撃する行動がその例である。一方、ヒト以外の動物における能動的攻撃性は比較的まれであり、計画的に行われる攻撃を指す。その代表例として「子殺し」と呼ばれる行動がある。これは、群れのリーダーが交代した際に、新しいリーダーが早期にメスと交尾できるよう、自身と血縁関係のない子を殺す現象である。ラングールやチンパンジーなど多くの霊長類のほか、ライオンや齧歯類などでも観察されている(7)。
このような行動には、「どの個体を殺すか」「いつ実行するか」といった判断や計画が関与しており、単なる衝動的反応とは異なる。ヒトではさらに発展し、事前に計画を立てて殺人を行ったり、集団や国家の規模で戦争を遂行したりする。能動的攻撃性には、単なる生存のためだけでなく、資源の獲得、地位の向上、心理的満足の獲得といった報酬が関与している。
反応的攻撃性と脳との関連については、扁桃体が重要な役割を果たしている。扁桃体は恐怖や不安などの情動を処理し、外部の脅威やストレスに反応して活動すると考えられている。また、反応的攻撃性が高い個体ほど、島皮質の体積が小さい傾向があることが報告されている(7)。島皮質は、大脳皮質の高次認知機能と扁桃体の情動処理との間で情報を統合する役割を担う。その前方に位置する前島皮質は、前帯状皮質と協働し、共感や思いやりといった利他的感情に関与しているとされる。したがって、島皮質が小さい場合、共感に基づく向社会的傾向が弱まり、扁桃体の情動反応が相対的に強まりやすく、感情に基づく攻撃的反応が生じやすくなる可能性がある。一方、能動的攻撃性が高い個体では、扁桃体の体積が小さい傾向があると報告されている(8)。これは、情動的反応が相対的に抑制され、冷静に計画を立てて攻撃行動を遂行する傾向を示唆している可能性がある。
個人間の攻撃性の差異には、遺伝的要因(ゲノム配列の差異)が大きく関与していることが示されている。9〜10歳の子どもを対象とした研究では、能動的攻撃性の遺伝率は40〜50%、反応的攻撃性の遺伝率は20〜40%と報告されている(9)。このように、攻撃性の個人差にも遺伝の影響が認められ、ゲノムの進化とともに徐々に変化してきたと考えられる。
攻撃性の進化と自己家畜化
ヒトにおける反応的攻撃性の低下は、ヒトが集団内で向社会的傾向(利他行動や協力行動)を促進する方向に進化してきたことと関係しているのであろうか。攻撃性の低下の進化に示唆を与える研究として、ロシアの進化生物学者ベリャエフが60年以上前に実施した有名な実験がある(10)。この研究では、野生のギンギツネの中から「人に慣れた」個体を選択し、交配を重ねた。その結果、わずか数世代のうちに、より人に慣れた性質をもつキツネが生まれるようになっただけでなく、形態的にもいくつかの変化が観察された(11)。たとえば、おとなしい性質を示すキツネでは、攻撃性が低下するとともに、頭部が丸くなり、体が小型化し、毛色の一部に変化が生じた。同様の変化は他の動物にもみられる。たとえばイヌの場合、人間が温和な個体を選択して交配を重ねることで、攻撃性が低下し、人に馴化した個体が増加した。その過程で、顔貌にも丸みが生じることが報告されている(図10)。
ヒトにおいても、集団内で協力的に行動する性質、すなわち「集団内向社会性」を高め、過度の攻撃性を抑制する方向に自然選択が作用してきた可能性が指摘されている。その結果、反応的攻撃性の低いヒトが進化し、家畜化された動物と類似した身体的・認知的特徴を示すようになったのではないかと論じられている(12)。キツネやイヌでは、人間が意図的に温和な個体を選択し続けることによって家畜化が進行した。一方、ヒトの場合には、社会的環境の中で結果的に同様の選択圧が働き、進化が進んだと考えられている。このような過程は「自己家畜化」と呼ばれる。
自己家畜化によって、攻撃性が低下しただけでなく、協力的なコミュニケーション能力や、他者の考えや意図を理解し共有する心的機能も発達したとする研究者もいる(12)。
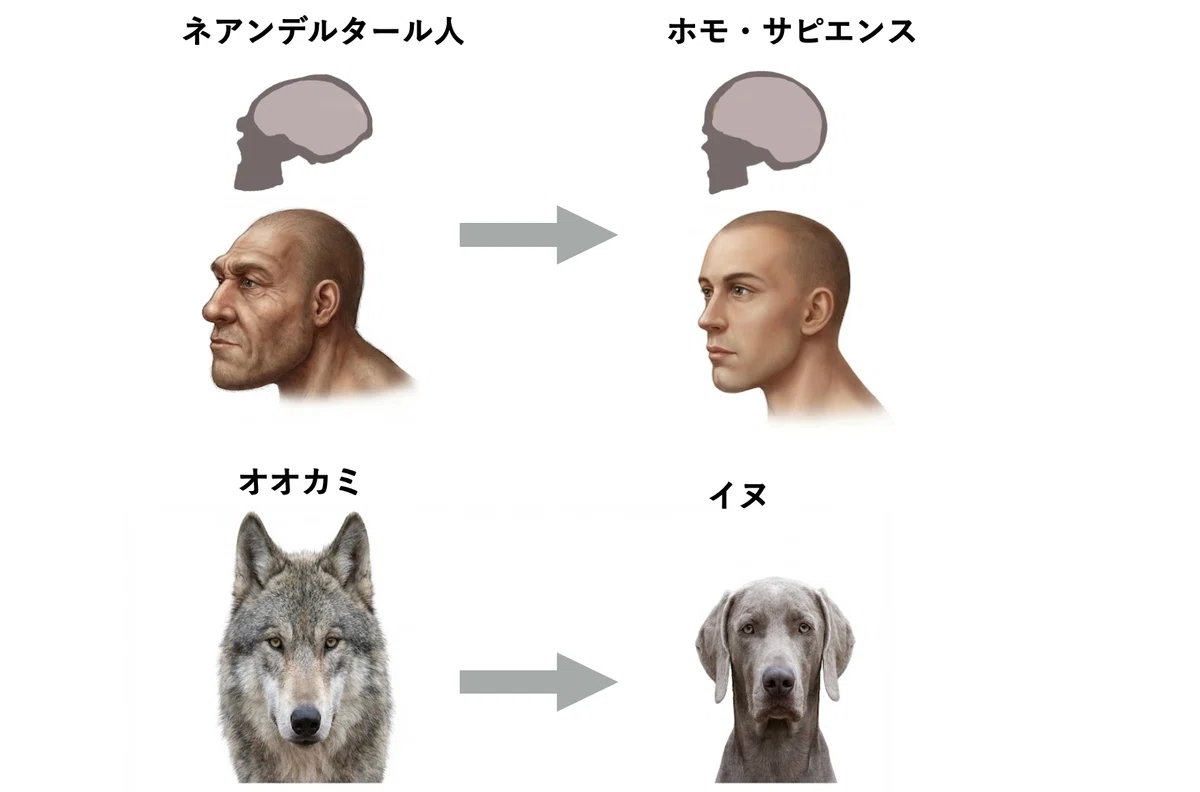
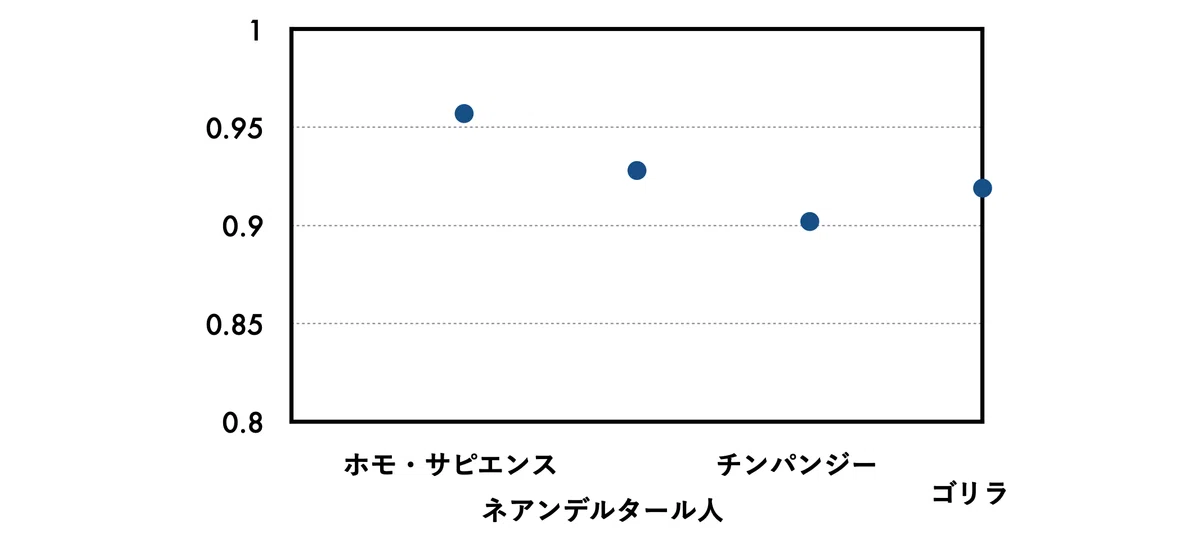
ヒトにおいて、いつ頃から協力的な個体が強く選択されるようになったのかについては、ネアンデルタール人との共通祖先からホモ・サピエンスが分岐した後、およそ10万~40万年前頃であると考えられている(13)。ヒトはネアンデルタール人と比較して、頭蓋骨がより球状になり、鼻が短縮し、上顎骨が縮小するなど、家畜化に類似した形態的特徴を示している(図10)。また、指の長さの比率(人差し指と薬指の長さの比:2D:4D)から攻撃性の差異を推定する研究もある。この方法の妥当性については議論があるものの、この比率は胎児期に受ける男性ホルモン(アンドロゲン)の影響を反映するとされ、2D/4D比が小さい(薬指が人差し指より相対的に長い)ほど攻撃性が高い傾向があると報告されている。ヒトでは、この比率がチンパンジーやネアンデルタール人よりも大きい傾向があり、攻撃性の低下を示唆する可能性がある(図11)(14)。
なぜ自己家畜化によって攻撃性が低下すると、体の形や毛色まで変化するのであろうか。現在有力な仮説の一つに、「神経堤細胞」が関与しているという説がある。神経堤細胞は、胎児期の初期発生段階(胚発生)に形成される細胞集団であり、将来的に多様な器官や組織へ分化する重要な細胞である。これらの細胞は末梢神経系の前駆細胞となるだけでなく、体内のさまざまな部位へ移動し、皮膚、神経、骨、軟骨など多様な細胞へと分化する。皮膚や毛髪の色素細胞も神経堤細胞に由来する。さらに、副腎の一部も神経堤細胞から形成される。副腎はコルチゾールなどのホルモンを分泌し、ストレス応答や攻撃性の調節に関与している。攻撃性の低い個体が選択される過程では、副腎の発達や機能に関わる遺伝子のDNA塩基配列(アレル)が自然選択を受け、その頻度が増加した可能性がある。その結果、神経堤細胞の数や機能、移動能力に変化が生じ、体の各部の発達に影響が及ぶと考えられている。これが、顔貌の丸み、小型化、毛色の部分的変化といった形態的特徴として現れる可能性がある。
ウィリアムズ症候群は神経発達に関わる遺伝性疾患であり、第7染色体上の約26〜28個の遺伝子が欠失することによって生じるとされている。この症候群の特徴の一つは、「抑制のない社交性」あるいは過度の親和性である。見知らぬ他者に対しても積極的に接近し、相手の顔を長時間見つめるなどの行動がみられる。一方、自閉スペクトラム症では対人接触を回避する傾向がみられることがあるが、ウィリアムズ症候群ではその対照的な傾向が示される。また、顔貌にも特徴的な形態が認められることがある。これらの症状は、神経堤細胞の発達や機能に影響が生じていることと関連すると考えられている。
さらに、ウィリアムズ症候群にみられる攻撃性の低さ、強い社交性、頭部や顔面形態の特徴は、「自己家畜化」と類似していると指摘されている。そのため、この症候群に関連する遺伝子群は、ヒトの自己家畜化の進化とも何らかの関連をもつ可能性が示唆されている。
ウィリアムズ症候群関連領域には、BAZ1B遺伝子が含まれている。この遺伝子は神経堤細胞の機能調節に関与すると考えられている。さらに、BAZ1Bは、ヒトがネアンデルタール人と分岐した後に自然選択を受けたと推定されている(15)。すなわち、ホモ・サピエンスにおける自己家畜化に関与する遺伝子の一つである可能性が指摘されている。
ただし、神経堤細胞に影響を及ぼし、顔面や頭部形態を形成する遺伝子の進化は、ネアンデルタール人との分岐以前から始まっていた可能性もある。ヒトがチンパンジーとの共通祖先から分岐した後に進化したヒト加速領域の中には、顔面形態や発達異常に関連する遺伝子を調節する塩基配列が含まれている(16)。その一例として、CNTNAP2遺伝子の発現を調節する配列が挙げられる。CNTNAP2は、鼻や眼の形態に関与するだけでなく、大脳皮質や海馬など脳の主要領域で発現していることが知られている。また、この遺伝子は自閉スペクトラム症や統合失調症などの神経発達特性とも関連が報告されている。
以上のように、ヒトは協力的行動(向社会的行動)を進化させる過程で、自己家畜化によって攻撃性(反応的攻撃性)を低下させてきた可能性がある。この進化はネアンデルタール人との分岐以前に始まっていた可能性があるものの、脳形態、顔貌、指比、遺伝子変化などの総合的証拠からみると、特にネアンデルタール人との分岐以降に顕著に進行したと考えられる。
ヒトの攻撃性の進化:まとめ
本稿で見てきたように、ヒトはチンパンジーとの共通祖先から分岐して以降、反応的攻撃性を低下させる方向に進化してきたと考えられる。これは、おそらくネアンデルタール人との共通祖先から分岐した後(約70〜80万年前)から、およそ40〜10万年前にかけて、ヒト特有の向社会的行動が進化し、その結果として集団内での協力行動が強化され、それに伴って集団内の攻撃性が低下したためであると思われる。
一方で、能動的攻撃性は必ずしも低下しておらず、むしろ高まっている可能性もある。能動的攻撃性は、より計画的であり、集団間の闘争や戦争を引き起こす性質をもつ。ヒトにおける協力行動や利他行動の進化は、内集団の成員に対する協力行動と同時に、外集団の成員に対する軽視や差別、さらには攻撃的傾向をも進化させた可能性がある。
このような攻撃性の進化を理解するためには、ヒトがどのような心の特性を進化させてきたのかを明らかにする必要がある。この点に関する解説は、拙著『心はどこまで進化したのかー心の個性のルーツをさぐる』(河出新書, 2026年7月予定)をお読みください。
引用文献
1. S・ピンカー, 暴力の人類史 (青土社, 2015).
2. J. M. Gómez, M. Verdú, A. González-Megías, M. Méndez, The phylogenetic roots of human lethal violence. Nature 538, 233–237 (2016).
3. R. W. Wrangham, M. L. Wilson, M. N. Muller, Comparative rates of violence in chimpanzees and humans. Primates 47, 14–26 (2006).
4. S. Abrutyn, K. Lawrence, From Chiefdom to State: Toward an Integrative Theory of the Evolution of Polity. Sociol. Perspect. 53, 419–442 (2010).
5. Global Terrorism Database. Available at: https://ourworldindata.org/terrorism [Accessed 2025].
6. R. W. Wrangham, Two types of aggression in human evolution. Proc National Acad Sci 115, 245–253 (2018).
7. A. Sarkar, R. W. Wrangham, Evolutionary and neuroendocrine foundations of human aggression. Trends Cogn. Sci. 27, 468–493 (2023).
8. J. Naaijen, et al., Specific cortical and subcortical alterations for reactive and proactive aggression in children and adolescents with disruptive behavior. NeuroImage: Clin. 27, 102344 (2020).
9. L. A. Baker, A. Raine, J. Liu, K. C. Jacobson, Differential Genetic and Environmental Influences on Reactive and Proactive Aggression in Children. J. Abnorm. Child Psychol. 36, 1265–1278 (2008).
10. D. K. Belyaev, Domestication of animals. Sci. J. 5, 47–52 (1969).
11. L. Trut, I. Oskina, A. Kharlamova, Animal evolution during domestication: the domesticated fox as a model. BioEssays 31, 349–360 (2009).
12. B. Hare, Survival of the Friendliest: Homo sapiens Evolved via Selection for Prosociality. Annu. Rev. Psychol. 68, 155–186 (2016).
13. 河田雅圭, 『心の進化と多様性:人間はどのような心を獲得してきたか』 (河出新書, 2026).
14. E. Nelson, C. Rolian, L. Cashmore, S. Shultz, Digit ratios predict polygyny in early apes, Ardipithecus, Neanderthals and early modern humans but not in Australopithecus. Proc. R. Soc. B: Biol. Sci. 278, 1556–1563 (2011).
15. M. Zanella, et al., Dosage analysis of the 7q11.23 Williams region identifies BAZ1B as a major human gene patterning the modern human face and underlying self-domestication. Sci. Adv. 5, eaaw7908 (2019).
16. S. L. Prescott, et al., Enhancer Divergence and cis-Regulatory Evolution in the Human and Chimp Neural Crest. Cell 163, 68–83 (2015).
